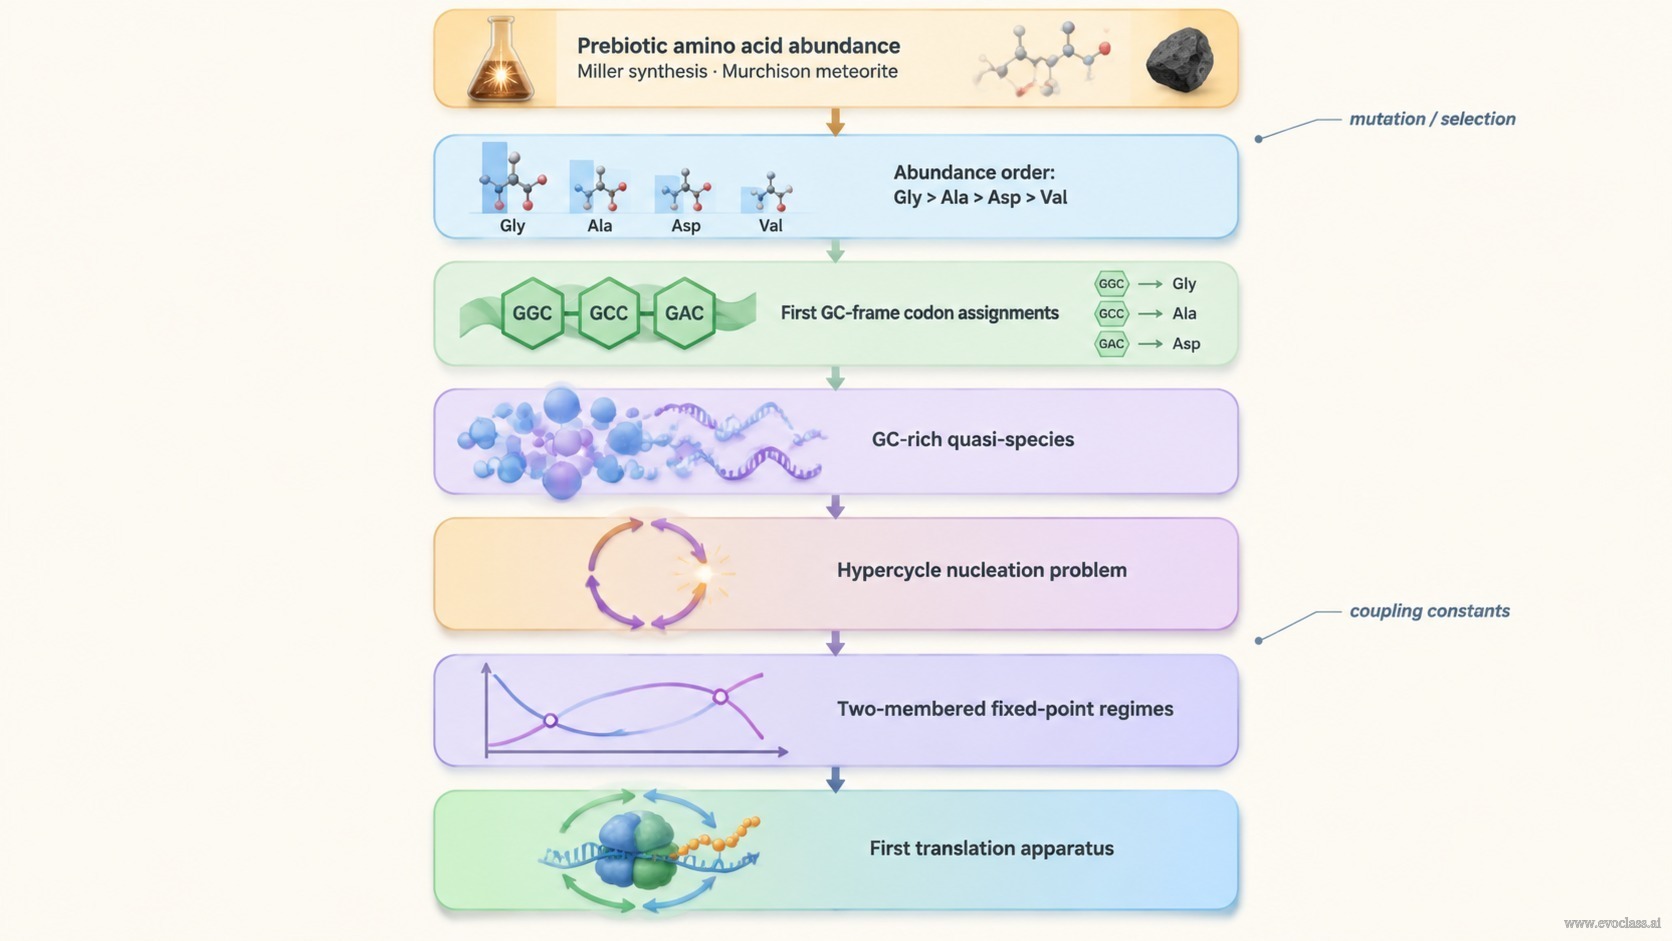
翻訳の起源は、通常リボソームが突如として組み上がった出来事として想像されます。このスライドは別の道筋をたどります。まず出発点となるのは 生命以前のアミノ酸の豊富さ であり、最初の翻訳装置がどのような高次の組織化の一部であったかを問いかけます。
生命以前の化学から最初のアルファベットへ
再現された生命以前の合成(Miller型実験)とマーチソン隕石の有機物の一覧は、限られた一群の 脂肪族アミノ酸に収束します。均一な混合物ではなく、収率と隕石中の存在度には強い偏りがあり、グリシンが最も多く、次いでアラニン、アスパラギン酸、バリンが続きます。この偏りこそが、最初の遺伝的アルファベットを描き出すための原材料となります。
豊富さの順序と最初のGCフレームコドン
この順序 Gly > Ala > Asp > Val は、最初のGCフレームコドンの割り当てを並べるために用いられます。GとCから構成されるコドンは、最も単純で最も豊富なアミノ酸にまず対応づけられ、化学的な豊富さと初期のコーディングパターンが一致します。この解釈では、最古のコーディングシステムはGCに富むものであり、その割り当ては偶然ではなく利用可能性の帰結です。
ハイパーサイクルの核形成問題
ハイパーサイクルは、単一の自己触媒的複製子とは異なる振る舞いをします。1つの複製子は原理的に単一の鋳型コピーから始まることができますが、環状ネットワークはそれができません。ループを閉じるには、そのすべての構成要素が同時に存在している必要があるからです。したがって、最初の翻訳装置は孤立した分子の発明ではありません。GCに富む準種から徐々に組み上げられ、突然変異と選択によって構成要素が一歩ずつ加えられ洗練されて、やがてサイクルが閉じるのです。
2構成要素ハイパーサイクルの固定点
2構成要素ハイパーサイクルの固定点解析は、結果が 相対的なカップリング定数 に依存することを示します。現れるのは3つの定性的レジームです。一方が他方を打ち負かす完全な競合、初期条件に応じていずれか一方が選択されるケース、そして互いを強化し合う相互ハイパーサイクル安定化です。翻訳と連関した装置を支えるのは最後のレジームのみです。RNA複製とペプチド合成が競合するのではなく互いを強化し合うのはこの場合だからです。
発明ではなく、しきい値としての翻訳
浮かび上がる全体像は、最初の翻訳装置が ハイパーサイクル系におけるしきい値 であり、RNA複製、ペプチド合成、触媒的閉環を結びつけるものだというものです。導きの問いは XI. 翻訳はどのように始まったのか? です。上のロードマップがこれに答えます。出発点は化学的な豊富さであり、到達点は突然変異、選択、十分なカップリングを経てたどり着く自己強化的なサイクルです。
生命以前のアミノ酸と最初の翻訳装置段階的なロードマップが、原始のアミノ酸の豊富さ(Miller型合成とマーチソン隕石のデータ)を最初の翻訳装置へと結びつけます。それは豊富さの順序Gly > Ala > Asp > Val、最古のGCフレームコドンの割り当て、GCに富む準種、ハイパーサイクルの核形成問題、2構成要素サイクルの固定点レジームを通り、RNA複製、ペプチド合成、触媒的閉環によって結び合わされた翻訳装置へと至ります。